Variations de la susceptibilité de Pectinidens diaphanus à Fasciola hepatica : vers une meilleure compréhension de la transmission en Patagonie
Micaela Müller Baigorria
Email: micaela.muller431@gmail.com / micaela.muller@ird.fr
Résumé
La transmission des maladies infectieuses dépend de nombreux facteurs, parmi lesquels les caractéristiques des organismes impliqués dans leur cycle. La susceptibilité des hôtes à l’infection constitue notamment un élément déterminant, car elle peut influencer à la fois la probabilité qu’une infection s’établisse et son intensité. Cette susceptibilité peut varier entre les populations d’une même espèce, contribuant ainsi à une distribution spatiale hétérogène du risque de transmission.
La fasciolose, causée par le parasite Fasciola hepatica, illustre l’importance de cette variation. Le cycle du parasite dépend de la présence d’escargots d’eau douce de la famille des Lymnaeidae, mais la capacité de ces escargots à soutenir son développement peut différer selon les espèces et les populations. Dans ce contexte, caractériser les hôtes potentiels et leur susceptibilité à F. hepatica est essentiel pour mieux comprendre les conditions permettant la transmission de la maladie.
En Patagonie, une région caractérisée par une forte prévalence de la fasciolose, les connaissances sur les escargots susceptibles de participer à la transmission de F. hepatica restent limitées. Nos travaux menés entre 2004 et 2026 ont montré que Pectinidens diaphanus est la seule espèce de Lymnaeidae dans la région sud de la Patagonie. Bien que cette espèce ait été régulièrement citée comme hôte intermédiaire de F. hepatica, sa capacité à permettre le développement du parasite n’avait jamais été démontrée expérimentalement. L’objectif de ce travail était donc d’évaluer, pour la première fois, sa susceptibilité à F. hepatica et de déterminer si celle-ci variait entre différentes populations d’escargots et différentes souches du parasite.
En mars 2026, nous avons collecté des populations de P. diaphanus dans six bassins hydrographiques de Patagonie australe, sélectionnés à partir de nos travaux antérieurs sur la distribution de l’espèce. Après avoir établi les différentes populations de P. diaphanus en laboratoire dans des conditions contrôlées, nous avons réalisé des infections expérimentales afin d’évaluer leur susceptibilité à F. hepatica.
Les résultats obtenus constituent une première démonstration expérimentale que P. diaphanus peut être infecté par F. hepatica et permettre le développement de ses formes larvaires jusqu’au stade de rédie. Ils ont également mis en évidence des différences de susceptibilité au parasite entre les populations de P. diaphanus. Ainsi, la présence d’un hôte potentiel ne suffit ainsi pas à prédire le potentiel de transmission, qui dépend également de la compatibilité entre l’hôte et le parasite. Ces résultats obtenus sont essentiels pour améliorer notre compréhension de la dynamique de la maladie et pour identifier les zones où la transmission est susceptible d’être plus importante en Patagonie australe.
Afin de poursuivre l’exploration du rôle de P. diaphanus comme hôte intermédiaire de F. hepatica, nous évaluerons la production des stades larvaires suivants (cercaires et métacercaires), puis nous testerons expérimentalement la capacité des métacercaires produites à infecter des moutons. Par ailleurs, afin d’explorer les mécanismes déterminant la susceptibilité de P. diaphanus, nous étudierons la diversité génétique, les traits d’histoire de vie et la réponse immunitaire des différentes populations.
Justification
Comprendre la transmission des maladies infectieuses est essentiel pour la santé humaine et animale, ainsi que pour la conservation de la biodiversité. Cependant, les caractéristiques des hôtes, notamment leur susceptibilité, ont parfois reçu moins d’attention dans les études d’écologie et d’épidémiologie des maladies (Beldomenico & Begon, 2010). La susceptibilité des hôtes peut fortement influencer la probabilité et l’intensité de l’infection et, par conséquent, le potentiel de transmission des maladies (Civitello & Rohr, 2014). Les différences de susceptibilité entre individus ou populations peuvent ainsi contribuer à une variation spatiale de la dynamique des maladies.
Cela est particulièrement pertinent dans le cas de la fasciolose, une maladie parasitaire à distribution mondiale causée par le trématode Fasciola hepatica. Le développement du parasite nécessite des escargots d’eau douce de la famille des Lymnaeidae, qui agissent comme hôtes intermédiaires. Ainsi, la présence d’hôtes appropriés constitue une condition préalable essentielle à l’établissement et à la transmission du parasite dans une région donnée. Cependant, toutes les espèces de Lymnaeidae ne sont pas également susceptibles à F. hepatica, et la susceptibilité peut également varier entre les populations d’une même espèce. Différentes combinaisons hôte–parasite peuvent donc conduire à des résultats d’infection sensiblement différents (Ngcamphalala et al., 2025; Vázquez et al., 2019). Par conséquent, identifier les hôtes potentiels présents dans une région, déterminer leur distribution et évaluer leur susceptibilité au parasite est essentiel pour estimer le potentiel de transmission et identifier les zones présentant un risque épidémiologique.
Première étape : identifier les hôtes intermédiaires potentiels présents dans la région d’étude
En Patagonie, la région avec la prévalence la plus élevées d’Argentine (Kleiman et al., 2007), la diversité et la distribution des escargots d’eau douce de la famille des Lymnaeidae, ainsi que leurs caractéristiques biologiques et leur susceptibilité à F. hepatica, restent encore mal comprises. Ses paysages vastes et fragmentés, associés à des conditions climatiques marquées, pourraient influencer la distribution des hôtes intermédiaires et, par conséquent, façonner la dynamique spatiale de la transmission du parasite.
Des campagnes de terrain menées entre 2004 et 2026 dans plusieurs provinces de Patagonie, combinées à des analyses morphologiques et moléculaires, ont montré que Galba viator / cubensis prédomine en Patagonie du Nord, tandis que Pectinidens diaphanus était la seule espèce de Lymnaeidae détectée dans nos campagnes en Patagonie australe (Figure 1 ; Müller Baigorria et al., 2026). Ces résultats suggèrent que P. diaphanus constitue la seule voie potentielle de transmission de F. hepatica en Patagonie australe. Cependant, la présence d’un hôte intermédiaire potentiel n’implique pas nécessairement que la transmission du parasite puisse avoir lieu. La susceptibilité de l’hôte détermine si le parasite peut s’établir et se développer avec succès au sein de celui-ci.
Deuxième étape : évaluer la susceptibilité de l’hôte au parasite
Bien que Pectinidens diaphanus ait fréquemment été cité comme hôte intermédiaire de F. hepatica (e.g. Correa et al., 2011; Duffy et al., 2009), sa capacité à permettre le développement du parasite n’a, à notre connaissance, jamais été démontrée expérimentalement, et aucune infection naturelle n’a été documentée. La désignation répétée de P. diaphanus comme hôte intermédiaire pourrait ainsi, en partie, résulter davantage de la reprise de rapports antérieurs — jamais confirmés expérimentalement — que de preuves réelles de sa compétence en tant qu’hôte.
Ce travail s’inscrit dans le troisième axe de ma thèse de doctorat et vise à évaluer expérimentalement, pour la première fois, la susceptibilité de Pectinidens diaphanus à Fasciola hepatica, la seule espèce de Lymnaeidae détectée en Patagonie australe. En évaluant l’infection chez différentes populations d’escargots et avec des souches du parasite provenant de différentes origines géographiques, nous cherchons à déterminer si la susceptibilité varie entre les populations de l’hôte et les souches du parasite, et à fournir une évaluation plus précise du rôle potentiel de P. diaphanus dans la transmission de la fasciolose en Patagonie australe.
Méthodes
Au cours du mois de mars 2026, grâce au soutien de la SFE2, nous avons réalisé une campagne de terrain dans six bassins hydrographiques. Les sites d’échantillonnage ont été sélectionnés sur la base d’une étude préalable sur la distribution de Pectinidens diaphanus (Müller Baigorria et al., 2026). Afin de limiter l’influence de la latitude sur les caractéristiques des populations, tous les sites sélectionnés se situaient à une latitude similaire et correspondaient à différents types d’habitats occupés par l’espèce (Figure 1). Sur chaque site, l’échantillonnage a été réalisé le long de la berge. Dans les habitats à substrat non consolidé (Cancha Carrera, Las Horquetas, Cerro Cuadrado et Chorrillo de los Frailes), nous avons collecté les escargots à l’aide d’une passoire, tandis que nous les avons collectés manuellement dans les habitats à substrat dur, tels que les lacs à fond rocheux (Laguna Azul et Potrok Aike). Pour chaque site, nous avons enregistré les coordonnées GPS et relevé la présence ou l’absence de gastéropodes de la famille des Lymnaeidae. Sur le terrain, nous avons distingué les limnéidés des autres gastéropodes d’eau douce présents dans les habitats patagoniens, principalement Physa acuta (coquille à orientation sénestre) et Chilina spp. (présence de motifs ondulés brunâtres caractéristiques sur la coquille; Cuezzo et al., 2020).
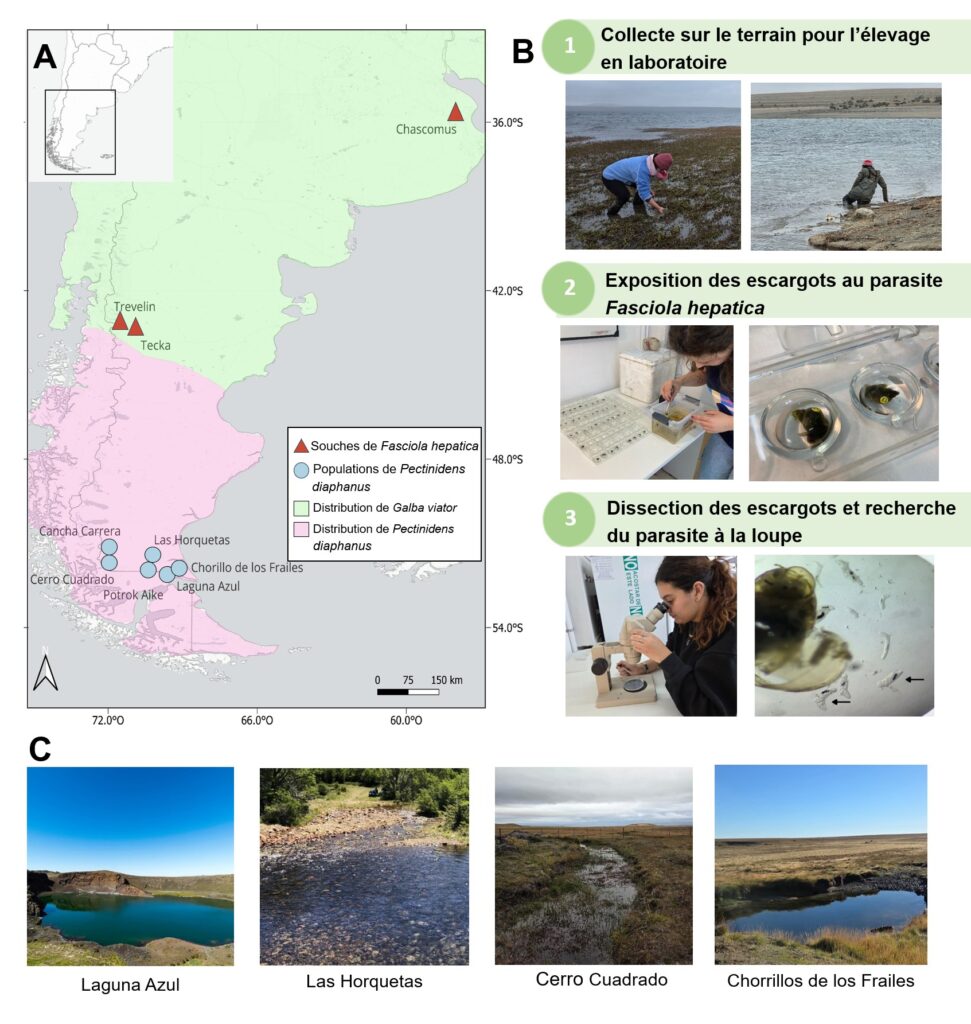
Fig. 1. Travail de terrain et de laboratoire réalisés grâce au soutien de la bourse de terrain 2026 de la SFE2. (A) Localisation des sites échantillonnés en Patagonie australe. Des escargots de Pectinidens diaphanus ont été collectés sur chaque site puis transportés au laboratoire. (B) Mise en place des élevages en laboratoire et réalisation des infections expérimentales avec Fasciola hepatica. (C) Exemples des différents sites échantillonnés au cours de la campagne de terrain.
Nous avons transporté des escargots vivants (N = 80–100) provenant de chaque site d’échantillonnage au laboratoire et maintenus dans des aquariums séparés de 1,5 L (deux aquariums par population), contenant de l’eau de source avec aération continue. Ces individus constituaient la génération G0. Les escargots ont été maintenus dans des conditions contrôlées à 16 ± 1 °C, avec un cycle de 16 h de lumière et 8 h d’obscurité, et nourris ad libitum avec de la laitue cuite puis broyée. Les individus collectés sur le terrain ont été maintenus dans ces conditions et reproduits jusqu’à l’obtention de la première génération en laboratoire (G1), afin d’obtenir des escargots exempts d’infections naturelles acquises sur le terrain.
Nous avons réalisé des infections expérimentales à l’aide de trois souches de Fasciola hepatica : deux provenant de Patagonie (Trevelin et Tecka) et une provenant de la région pampéenne (Chascomús, Figure 1). Les œufs de F. hepatica ont été prélevés dans la vésicule biliaire d’animaux récemment abattus. Les souches patagoniennes avaient été isolées chez des ovins, tandis que la souche provenant de la région pampéenne avait été isolée chez des bovins. En parallèle, nous avons réalisé des infections expérimentales chez Galba viator/cubensis, espèce reconnue comme hôte intermédiaire de ce parasite, afin de servir de contrôle positif. Nous avons exposé individuellement les escargots à cinq miracidia (larve) de F. hepatica fraîchement éclos. À 30 jours post-infection, nous avons déterminé la présence de rédies par dissection sous loupe binoculaire (Figure 2).
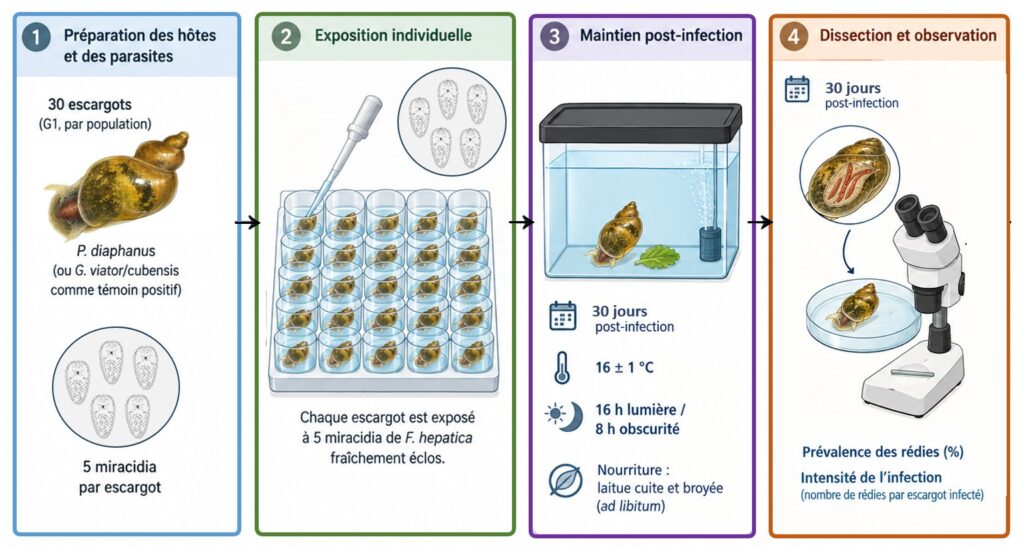
Fig. 2. Protocole expérimental d’infection de Pectinidens diaphanus et Galba viator / cubensis par Fasciola hepatica. Trente escargots de chaque population (génération G1) ont été exposés individuellement à cinq miracidia de F. hepatica. Après 30 jours post-infection, les escargots ont été disséqués sous loupe stéréoscopique afin d’évaluer l’infection. La prévalence de l’infection correspond à la proportion d’escargots infectés parmi les 30 individus exposés, tandis que l’intensité de l’infection correspond au nombre de rédies observées chez chaque escargot infecté.
Résultats et discussion
Les essais expérimentaux ont montré pour la première fois qu’en conditions de laboratoire, Pectinidens diaphanus peut être infecté par Fasciola hepatica et permettre le développement de ses formes larvaires jusqu’au stade de rédie. Ces résultats étayent l’hypothèse selon laquelle cette espèce pourrait jouer un rôle d’hôte intermédiaire de F. hepatica et élargissent les connaissances sur la diversité des espèces de Lymnaeidae potentiellement impliquées dans le cycle de transmission du parasite.
La susceptibilité de P. diaphanus à F. hepatica variait à la fois en fonction de l’origine géographique de la souche du parasite et de la population du mollusque (Tableau 1). Les individus provenant de Cerro Cuadrado ont présenté les prévalences d’infection les plus élevées, avec des valeurs de 18 % et 22 % vis-à-vis des deux souches patagoniennes, respectivement, tandis que les autres populations ont montré des prévalences faibles ou nulles, comprises entre 0 et 12 %. Les infections expérimentales réalisées avec Galba viator/cubensis, utilisé comme contrôle positif, ont permis de confirmer l’infectiosité des deux souches patagoniennes de Fasciola hepatica. Aucune infection n’a toutefois été observée avec la souche provenant de la région pampéenne, y compris chez le contrôle positif.
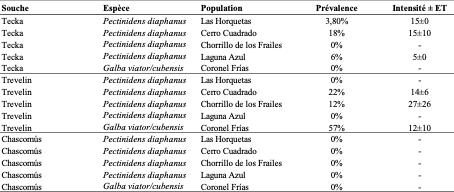
Tableau 1. Résultats des infections expérimentales avec Fasciola hepatica. La prévalence (%) correspond à la proportion d’individus infectés parmi les individus exposés. L’intensité moyenne ± écart-type (ET) correspond au nombre de larves par escargot infecté.
Les résultats mettent en évidence une variation de la susceptibilité de P. diaphanus à F. hepatica entre les populations de mollusques exposées. Les deux souches patagoniennes ont été capables d’établir des infections chez P. diaphanus, bien que la prévalence ait varié entre les populations. En revanche, aucun développement de l’infection n’a été observé chez P. diaphanus exposé à la souche provenant de la région pampéenne. Cependant, l’absence d’infection chez le contrôle positif (Galba viator/cubensis) exposé à cette même souche ne permet pas d’interpréter ce résultat comme une incompatibilité entre la souche de Chascomús et P. diaphanus. Cette absence d’infection pourrait plutôt être liée à une diminution de la viabilité des œufs de F. hepatica, potentiellement due aux conditions de filtration et/ou de conservation, pouvant affecter la qualité des miracidies et, par conséquent, leur capacité infectieuse.
Le fait que les individus provenant de Cerro Cuadrado aient présenté une susceptibilité plus élevée aux deux souches patagoniennes, par rapport aux autres populations exposées à ces mêmes souches, suggère une différenciation de la susceptibilité entre les populations de P. diaphanus. Plusieurs mécanismes pourraient contribuer à expliquer cette variation, notamment des différences génétiques entre populations, liées à leur histoire démographique ou à une différenciation locale de traits impliqués dans l’interaction hôte-parasite. Dans des environnements fragmentés, les populations d’hôtes et de parasites peuvent être soumises à des conditions environnementales et à des pressions de sélection différentes, favorisant une différenciation locale de certains traits impliqués dans les interactions hôte-parasite (Penczykowski et al., 2015).
Afin de mieux comprendre les mécanismes à l’origine des différences de susceptibilité observées, deux approches complémentaires seront mises en œuvre. D’une part, la diversité allélique et les traits d’histoire de vie des différentes populations de P. diaphanus seront caractérisés afin d’évaluer dans quelle mesure les différences de susceptibilité pourraient être associées à une différenciation génétique ou à des différences dans les caractéristiques biologiques des populations. D’autre part, nous étudierons la réponse immunitaire des escargots à la suite de leur exposition au parasite.
Finalement, la capacité des escargots infectés à émettre des cercaires sera évaluée. Les métacercaires produites seront ensuite utilisées pour infecter expérimentalement des moutons afin de confirmer la capacité de P. diaphanus à permettre la transmission de F. hepatica et à compléter son cycle parasitaire. La mise en relation de ces données permettra ainsi de mieux comprendre les mécanismes impliqués dans la compatibilité hôte-parasite chez P. diaphanus.
Dans l’ensemble, les résultats obtenus dans cette étude mettent en évidence des différences marquées de susceptibilité entre les populations de Pectinidens diaphanus. Ces résultats soulignent que la présence du parasite et d’un hôte intermédiaire potentiel ne suffit pas, à elle seule, à prédire le potentiel de transmission. La transmission dépend plutôt d’une interaction complexe entre l’hôte et le parasite, qui peut varier même à des échelles spatiales relativement fine. Cette mosaïque spatiale de compatibilité peut influencer la probabilité et l’intensité de l’infection et, par conséquent, le potentiel de transmission de la fasciolose en Patagonie australe, à l’extrême sud de son aire de distribution. La prise en compte de cette variation de la susceptibilité des hôtes pourrait ainsi être essentielle pour améliorer notre compréhension de la dynamique de la maladie et pour identifier les zones où la transmission est susceptible d’être plus importante.
Références
Beldomenico, P. M., & Begon, M. (2010). Disease spread, susceptibility and infection intensity : Vicious circles? Trends in Ecology & Evolution, 25(1), 21‑27. https://doi.org/10.1016/j.tree.2009.06.015
Civitello, D. J., & Rohr, J. R. (2014). Disentangling the effects of exposure and susceptibility on transmission of the zoonotic parasite Schistosoma mansoni. Journal of Animal Ecology, 83(6), 1379‑1386. https://doi.org/10.1111/1365-2656.12222
Correa, A. C., Escobar, J. S., Noya, O., Velásquez, L. E., González-Ramírez, C., Hurtrez-Boussès, S., & Pointier, J.-P. (2011). Morphological and molecular characterization of Neotropic Lymnaeidae (Gastropoda : Lymnaeoidea), vectors of fasciolosis. Infection, Genetics and Evolution, 11(8), 1978‑1988. https://doi.org/10.1016/j.meegid.2011.09.003
Cuezzo, M. G., Gutiérrez Gregoric, D. E., Pointier, J.-P., Vázquez, A. A., Ituarte, C., Dreher Mansur, M. C., Arruda, J. O., Barker, G. M., Dos Santos, S. B., Ovando, X. M. C., De Lacerda, L. E. M., Fernandez, M. A., Thiengo, S. C., De Mattos, A. C., Da Silva, E. F., Berning, M. I., Collado, G. A., Miyahira, I. C., Antoniazzi, T. N., … Damborenea, C. (2020). Phylum Mollusca. In Thorp and Covich’s Freshwater Invertebrates (p. 261‑430). Elsevier. https://doi.org/10.1016/B978-0-12-804225-0.00011-3
Duffy, T., Kleiman, F., Pietrokovsky, S., Issia, L., Schijman, A. G., & Wisnivesky-Colli, C. (2009). Real-time PCR strategy for rapid discrimination among main lymnaeid species from Argentina. Acta Tropica, 109(1), 1‑4. https://doi.org/10.1016/j.actatropica.2008.08.003
Kleiman, F., Pietrokovsky, S., Prepelitchi, L., Carbajo, A. E., & Wisnivesky-Colli, C. (2007). Dynamics of Fasciola hepatica transmission in the Andean Patagonian valleys, Argentina. Veterinary Parasitology, 145(3), 274‑286. https://doi.org/10.1016/j.vetpar.2006.12.020
Müller Baigorria, M., Abafatori, M., Chapuis, E., Juillet, N., Faugère, D., Jarne, P., David, P., Pointier, J.-P., Hurtrez-Boussès, S., Alda, P., & Bonel, N. (2026). Heritable shell differentiation among populations of the sole lymnaeid snail across freshwater habitats in southern Patagonia. BioRxiv. https://doi.org/10.64898/2026.05.14.725217
Ngcamphalala, P. I., Nyagura, I., Malatji, M. P., & Mukaratirwa, S. (2025). Susceptibility of lymnaeid snails to Fasciola hepatica and Fasciola gigantica (Digenea : Fasciolidae): a systematic review and meta-analysis. PeerJ, 13, e18976. https://doi.org/10.7717/peerj.18976
Penczykowski, R. M., Laine, A., & Koskella, B. (2015). Understanding the ecology and evolution of host–parasite interactions across scales. Evolutionary Applications, 9(1), 37‑52. https://doi.org/10.1111/eva.12294
Vázquez, A. A., Alda, P., Lounnas, M., Sabourin, E., Alba, A., Pointier, J. P., & Hurtrez-Boussès, S. (2019). Lymnaeid snails hosts of Fasciola hepatica and Fasciola gigantica (Trematoda : Digenea): a worldwide review. CABI Reviews, 2018, 1‑15. https://doi.org/10.1079/PAVSNNR201813062
Utilisation de la bourse
La totalité de la bourse de terrain SFE2 a été utilisée pour financer les frais liés à la campagne d’échantillonnage réalisée en Patagonie australe.
Une partie des fonds a servi à financer les déplacements depuis le Laboratoire de Génétique et d’Écologie Évolutive (CERZOS, Bahía Blanca, Argentine) jusqu’à Río Gallegos, soit environ 1 800 km au total, dont 800 km parcourus en bus et 1 000 km en avion, sur deux jours de trajet. Les fonds restants ont permis de financer la location d’un véhicule, nécessaire pour se déplacer entre les différents sites d’échantillonnage, représentant environ 600 km supplémentaires, ainsi que les frais d’hébergement pour moi-même et ma directrice de thèse, Pilar Alda, pendant la campagne de terrain.
Commentaires récents